
سنتز cDNA و پرایمر

سنتز cDNA تولید DNA مکمل (cDNA) از یک الگوی RNA با رونویسی معکوس را توصیف می کند. ترنس کریپتازهای معکوس (RTs) از یک الگوی RNA و یک پرایمر مکمل RNA برای هدایت سنتز cDNA رشته اول استفاده می کنند که می تواند مستقیماً به عنوان یک الگو برای واکنش زنجیره ای پلیمراز (PCR) استفاده شود. این ترکیب رونویسی معکوس و PCR (RT-PCR) امکان تشخیص RNA هایی با فراوانی کم در یک نمونه و تولید cDNA مربوطه را فراهم می کند و در نتیجه شبیه سازی ژن هایی با کپی کم را تسهیل می کند. روش دیگر، cDNA رشته اول را می توان با استفاده از DNA پلیمراز I و DNA لیگاز دو رشته ای ساخت.
سنتز DNA مکمل (cDNA) از RNA اولین قدم ضروری در بسیاری از کاربردهای مولکولی است. تجزیه و تحلیل بیان ژن، تشخیص پاتوژن و آزمایش ژنتیکی توسط PCR کمی زمان واقعی (qPCR) یا توالی یابی نسل بعدی (NGS) تنها چند نمونه از کاربردهایی هستند که نیاز به رونویسی RNA به cDNA در مرحله اولیه دارند. نتایج دقیق با استفاده از این کاربردها نیازمند دقت بالا در سنتز cDNA است به طوری که کتابخانه cDNA به طور دقیق رونوشت های RNA اصلی را نشان می دهد. کتابخانه cDNA به مجموعه بزرگی از کلون های cDNAی حاصل که همه mRNAهای بیان شده در یک نوع سلولی را نشان می دهد، گفته می شود. دو ملاحظه مهم برای انتخاب کیت سنتز cDNA، آنزیم ترنس کریپتاز معکوس و استراتژی پرایمر مورد استفاده برای شروع واکنش است. انتخاب آنزیم بر سرعت سنتز و دقت واکنش تأثیر می گذارد.
ترنس کریپتازهای معکوس مورد استفاده در زیست شناسی مولکولی، DNA پلیمرازهای وابسته به RNA نوترکیب هستند که تبدیل RNA به DNA را در واکنش سنتز cDNA رشته اول کاتالیز می کنند. این واکنش یک مولکول مارپیچ دوگانه هیبریدی RNA-DNA تولید می کند. ترنس کریپتازهای معکوس دارای یک دامنه RNase H با فعالیت اندوریبونوکلئاز هستند که به طور خاص RNA را هنگامی که قطعه RNA با DNA کمپلکس می شود، تجزیه می کند. تخریب RNA در یک مجموعه RNA-DNA تضمین می کند که قطعه RNA فقط یک بار رونویسی می شود و دقت واکنش را تضمین می کند.
پرایمرهای تصادفی توالی الیگونوکلئوتیدی از شش باز یا بیشتر هستند. هر پرایمر تصادفی آرایش متفاوتی دارد که به آن پتانسیل آنیل شدن در بسیاری از نقاط تصادفی رونوشت RNA را می دهد و پوشش کامل رونوشت را تضمین می کند. با تغییر طول پرایمر به جای استفاده از هگزامرها، می توان از تمایل به تولید قطعات cDNA کوتاهتر جلوگیری کرد. یک عیب بالقوه پرایمرهای تصادفی این است که می توانند به دلیل پرایمینگ داخلی منجر به تخمین بیش از حد تعداد کپی در qPCR استاندارد شوند که منجر به توالی های کوتاه شده و سپس در دورهای بعدی تقویت بیش از حد نشان داده می شوند. در نهایت ترکیب پرایمرهای تصادفی و الیگو(dT) بر مضرات هر مکانیزم پرایمینگ غلبه می کند.
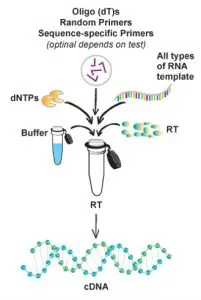
همانطور که اشاره شد، سنتز cDNA، فرآیند ایجاد DNA از الگوی RNA از طریق رونویسی معکوس، اولین گام مهم در بسیاری از پروتکلهای زیستشناسی مولکولی است. از مطالعات بیان ژن گرفته تا انواع کاربردهای پایین دست، cDNA یک ابزار ارزشمند در تحقیقات RNA است. در زیر به ۵ مرحله اساسی سنتز cDNA بهینه اشاره می کنیم:
۱- آماده سازی RNA نمونه برای سنتز cDNA:
RNA به عنوان الگو در سنتز cDNA عمل می کند. RNA کل به طور معمول در سنتز cDNA برای کاربردهایی مانند RT-(q)PCR استفاده می شود، در حالی که انواع خاصی از RNA (به عنوان مثال، RNA پیام رسان (mRNA) و RNA های کوچک مانند miRNA) ممکن است برای کاربردهای خاصی مانند ساخت کتابخانه cDNA مورد استفاده قرار گیرند. حفظ یکپارچگی RNA حیاتی است و نیاز به اقدامات احتیاطی ویژه در طول استخراج، پردازش، ذخیره سازی و استفاده آزمایشی دارد. بهترین راهکارها برای جلوگیری از تخریب RNA شامل پوشیدن دستکش، پیپت کردن با aerosol-barrier tips، استفاده از آزمایشگاهها و معرف های ویژه، و ضدعفونی کردن مناطق کار است.
برای جداسازی و خالصسازی RNA، استراتژیهای مختلفی بسته به نوع مواد منبع (مانند خون، بافتها، سلولها، گیاهان) و اهداف آزمایشها در دسترس است. اهداف اصلی کار جداسازی، تثبیت مولکولهای RNA، مهار RNaseها و به حداکثر رساندن بازده با روشهای ذخیرهسازی و استخراج مناسب است. روشهای خالصسازی بهینه، مهارکننده های رایجی را که با فعالیت ترانس کریپتازهای معکوس تداخل میکنند، حذف میکند. چنین بازدارندههایی شامل ترکیبات درونزا از مواد نمونه بیولوژیکی، یا ترکیبات بازدارنده از معرفهای جداسازی RNA، مانند نمکها، یونهای فلزی، اتانول و فنل هستند. پس از خالص سازی، RNA باید در دمای 80- درجه سانتی گراد با حداقل چرخه های انجماد و ذوب ذخیره شود.
۲- حذف DNA ژنومی نمونه آماده سازی شده برای سنتز cDNA:
مقادیر کمی از DNA ژنومی (gDNA) ممکن است به همراه RNA خالص شود. gDNA آلوده می تواند با رونویسی معکوس تداخل داشته باشد و ممکن است منجر به مثبت کاذب، پس زمینه بالاتر یا تشخیص کمتر در کاربردهای حساس مانند RT-qPCR شود. روش سنتی حذف gDNA، افزودن DNase I به محلول RNA جدا شده است. با این حال، DNase I باید قبل از سنتز cDNA حذف شود زیرا هر آنزیم باقیمانده DNA تک رشته ای را تخریب می کند و نتایج RT-PCR را به خطر می اندازد. متأسفانه، روشهای غیرفعالسازی DNase I اغلب میتواند منجر به از دست دادن یا آسیب RNA شود.
۳- انتخاب ترانس کریپتاز معکوس برای بهبود بازده cDNA:
بیشتر ترنس کریپتازهای معکوس مورد استفاده در زیست شناسی مولکولی از ژن pol ویروس میلوبلاستوز پرندگان (AMV) یا ویروس لوسمی موش مولونی (MMLV) مشتق شده اند. ترنس کریپتاز معکوس AMV یکی از اولین آنزیم هایی بود که برای سنتز cDNA در آزمایشگاه جدا شد. این آنزیم دارای فعالیت RNase H قوی است که RNA را در هیبریدهای RNA:cDNA تجزیه می کند و در نتیجه قطعات cDNA کوتاهتر (<5 کیلوباز) ایجاد می کند.
۴- آماده سازی مخلوط واکنش برای سنتز cDNA:
علاوه بر آنزیم، اجزای اصلی واکنش برای سنتز cDNA عبارتند از الگوی RNA (پیش تیمار شده برای حذف DNA ژنومی)، بافر، dNTPs، DTT، مهارکننده RNase، آب بدون نوکلئاز و پرایمرها.
۵- سنتز cDNA:
واکنش های رونویسی معکوس شامل سه مرحله اصلی است: آنیلینگ(annealing) پرایمر، پلیمریزاسیون DNA و غیرفعال کردن آنزیم. دما و مدت این مراحل بر اساس انتخاب پرایمر، RNA هدف و ترنس کریپتاز معکوس مورد استفاده متفاوت است.


